| タイトル |
イネの遺伝子機能解析および分子育種に有用な形質転換ベクターセット |
| 担当機関 |
(独)農業・生物系特定産業技術研究機構 中央農業総合研究センター |
| 研究期間 |
1998~2002 |
| 研究担当者 |
黒田昌治
増村威宏
田中國介
|
| 発行年度 |
2004 |
| 要約 |
ベクターセットは、基本バイナリーベクター、RNAiベクター、補助プラスミドより構成される。これらを利用すると、複数種の遺伝子カセットを1つのバイナリーベクター上に連結して、1回の形質転換でイネに導入できるので、遺伝子発現の多重改変が容易である。
|
| キーワード |
組換えイネ、バイナリーベクター、RNAi、分子育種、貯蔵タンパク質
|
| 背景・ねらい |
ポストイネゲノム研究としての遺伝子機能解明研究や、有用遺伝子導入による分子育種研究では、2つ以上の遺伝子の発現を同時に改変したい状況がしばしば生ずる。これまでは、単独の遺伝子について改変した組換えイネどうしを交配するか、コ・トランスフォーメーションを行うのが一般的であった。しかし、作業が煩雑で選抜や世代促進に時間がかかるなど、迅速な解析の障害となる要素が多い。そこで、複数種の遺伝子カセットを1つのバイナリーベクター上に連結して、1回の形質転換で導入できる、新たなベクターセットを構築することを目的とする。
|
| 成果の内容・特徴 |
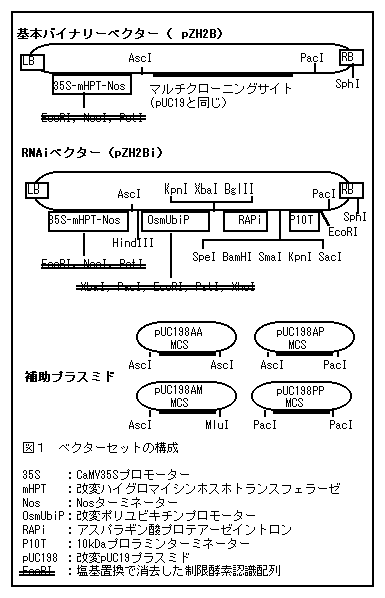
- ベクターセットは、基本バイナリーベクター、RNAiベクター、補助プラスミドより構成される(図1)。RNAiベクターについては、標的遺伝子の極めて短い断片(20bp以上)を用いるだけで、発現抑制効果を発揮できることを確認している。また補助プラスミドは、後述のように複数の遺伝子カセットを連結する際に用いる。
- ベクターに組み込まれている遺伝子断片は、塩基置換などによりいくつかの制限酵素認識配列を消去してある。また、マルチクローニングサイトは、pUC19と同様の配列に加えて、8塩基認識酵素であるAscIとPacIの認識配列を追加してある。これにより、従来のベクターよりも利用できる制限酵素が多くなり、遺伝子構築が容易となる。
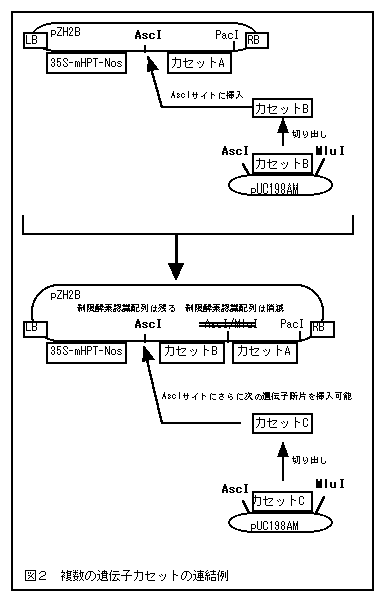
- 補助プラスミドを用いた遺伝子カセットの連結手順について、一例を図2に示す。まず、カセットAをpZH2B上で、カセットBをpUC198AM上で構築する。AscI切断末端とMluI切断末端は連結可能なので、カセットBをAscI-MluI処理で切り出し、カセットAを含むpZH2BのAscI認識配列部分に挿入することにより、2つのカセットを1つのベクター上に連結できる。このとき、AscI切断末端とMluI切断末端を連結した部分は両方の制限酵素認識配列が消滅し、AscI切断末端どうしを連結した部分はAscI認識配列が維持される。よって、残ったAscI認識配列部分に、さらに別の遺伝子カセットC以降を同様の操作で挿入できる。
- 以上のように、本ベクターセットを利用すると、発現抑制遺伝子カセットや過剰発現遺伝子カセットを、任意の組み合わせで1つのバイナリーべクター上に迅速に連結できる。完成したベクターは、任意のイネ品種に1回の形質転換で導入できるので、遺伝子発現を多重改変した組換えイネが容易に得られる。一連の操作に特別な機材や技術は必要ないので、当該分野の研究室であれば実施可能であり、遺伝子機能解析や分子育種の研究全般に有用である。
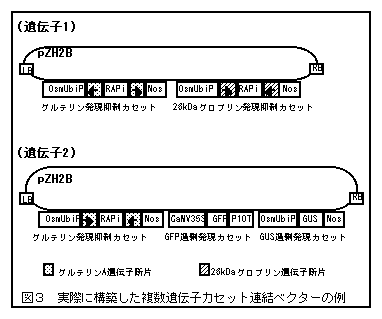
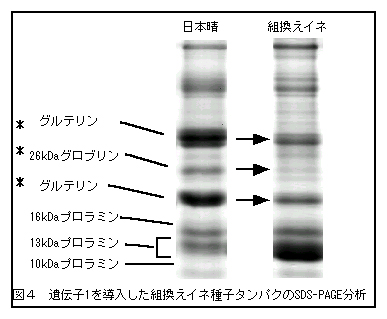
- 実施例を示すと、例えば図3の遺伝子1は発現抑制カセットを2つ連結したものであり、これをイネに導入すると、貯蔵タンパク質であるグルテリン含有量と26kDaグロブリン含有量が同時に低減したイネ種子が得られる(図4)。図3の遺伝子2は発現抑制カセットと過剰発現カセットを併用して3つ連結したものであり、これをイネに導入すると、グルテリンが低減し、かつGFPとGUSの両方を過剰発現するイネ種子が得られる。
|
| 成果の活用面・留意点 |
- 本成果で用いたpZH2Bの基本骨格はバイナリープラスミドpPZP202(Plant Mol. Biol. 25, 989-994, 1994)であるが、方法論は他のタイプのバイナリープラスミドにも適用できる。
- 解析目的遺伝子が持つ制限酵素認識部位によっては、本成果を適用しにくい場合もありうる。
- pZH2Bは、マメ類(アズキ、ダイズ)の形質転換にも利用されている。
|
| 図表1 |
 |
| 図表2 |
 |
| 図表3 |
 |
| 図表4 |
 |
| カテゴリ |
あずき
育種
大豆
品種
|


